Quand votre modèle animal change, pourquoi changer d’anticorps ?
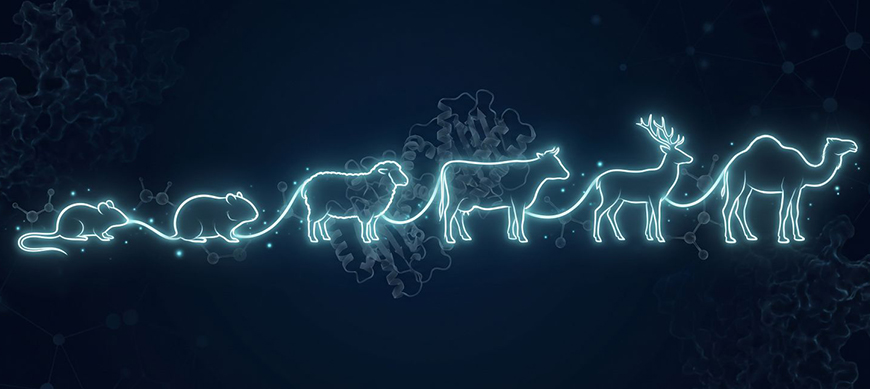
La recherche sur les maladies à prions ne se limite plus aux modèles historiques, tels que la souris ou le hamster. Aujourd’hui, les études et les programmes de surveillance des encéphalopathies spongiformes transmissibles (ESST) concernent également les bovins, les petits ruminants, les cervidés et les camélidés.
Cette diversification soulève une question essentielle : votre anticorps reconnaîtra-t-il toujours sa cible lorsque vous changez de modèle animal ?
Les anticorps monoclonaux anti-PrP SAF32 (A03202) et Sha31 (A03213) apportent une réponse concrète. D’après les publications scientifiques examinées, ces deux clones ont permis la détection de la protéine PrP dans 10 espèces appartenant à 5 ordres de mammifères, des primates aux marsupiaux (1-12).
Deux clones, une large couverture d’espèces
Les publications scientifiques documentent l’utilisation de SAF32 et Sha31 dans 10 espèces de mammifères appartenant à 5 ordres taxonomiques distincts, notamment l’Homme, la souris, le hamster, le mouton, le bovin, le cerf de Virginie ou encore le dromadaire (1-12).
Cette couverture d’espèces constitue un atout pour les laboratoires travaillant sur plusieurs modèles animaux ou menant des études comparatives.
SAF32 : ciblage de la région N-terminale de la PrP
L’anticorps monoclonal SAF32 (A03202) reconnaît la région des répétitions octapeptidiques située dans la partie N-terminale de la protéine PrP. La littérature rapporte son utilisation chez plusieurs espèces, dont l’Homme (9, 10), la souris (8), le dromadaire (1) et le phascogale à queue rouge (Phascogale calura), un marsupial australien (4).
Sha31 : un anticorps largement utilisé pour la détection multi-espèces
L’anticorps Sha31 (A03213) cible quant à lui l’hélice α1 du domaine globulaire C-terminal de la protéine PrP. La séquence épitopique reconnue par Sha31 (YEDRYYRE) est décrite dans la littérature comme étant conservée chez plusieurs espèces (11), ce qui contribue à expliquer sa large utilisation dans les études de détection de la PrP et les programmes de surveillance des ESST.
La littérature rapporte son utilisation chez l’Homme, la souris, le hamster et le mouton (12), le bovin (3, 7), le cerf de Virginie et le raton laveur (2), le campagnol roussâtre (5) et le dromadaire (1).
Un avantage pour les études multi-espèces
Cette large couverture documentée permet de limiter les changements de réactifs lors du passage d’un modèle animal à un autre et facilite les études comparatives en utilisant le même anticorps de détection. Elle réduit ainsi une source potentielle de variabilité expérimentale et facilite la comparaison des résultats au sein d’une même étude.
Un avantage particulièrement intéressant pour les laboratoires impliqués dans la recherche sur les prions, le typage moléculaire et les programmes de surveillance des ESST.
Une polyvalence illustrée par la littérature scientifique
Plusieurs publications mettent en évidence la capacité de ces anticorps à être utilisés dans différents contextes expérimentaux, tels que :
- Vilette et al. (2016) : utilisation de Sha31 pour détecter la PrP<sup>res</sup> de plusieurs espèces au sein d’une même étude (12),
- Cassmann et al. (2022) : utilisation de Sha31 dans des travaux portant sur la transmission de la Chronic Wasting Disease (CWD) chez le cerf de Virginie (2),
- Amara et al. (2025) : utilisation conjointe de SAF32 et Sha31 lors de la première identification de la maladie à prions du dromadaire en Tunisie. Sha31 a servi à la détection de la PrP<sup>res</sup>, SAF32 à la caractérisation moléculaire distinguant cette maladie de la tremblante classique (1, preprint).
Vous travaillez sur une nouvelle espèce ?
Découvrez les espèces documentées pour SAF32 (A03202) et Sha31 (A03213) et choisissez l’anticorps anti-PrP le mieux adapté à votre application.